Рост бактерий – это деление клетки на две дочерние, генетически полностью идентичные исходной материнской клетке. В оптимальных условиях популяция бактерий удваивается каждые 9,8 мин. В среднем рост популяции бактерий описывается экспоненциальным законом.
Рост микроорганизмов-продуцентов (зависимость логарифма числа клеток от времени) имеет вид S – образной кривой. Выделяют четыре фазы роста – 1 – lag-фаза, 2 – фаза экспоненциального роста или log-фаза, 3 – стационарная фаза, 4 – фаза отмирания. Во время 1-ой lag-фазы (привыкание) бактерии адаптируются к новым условиям, идет синтез РНК, ферментов и других биологически важных соединений. 2-я фаза - экспоненциальная фаза – период удвоения клеток, зависимость логарифма числа клеток от времени представляет собой прямую. Очевидно, что рост микроорганизмов не может продолжаться бесконечно из-за истощения питательной среды и накопления токсичных продуктов метаболизма. В период 3-ей, стационарной фазы, скорости роста и отмирания клеток выравниваются, и число клеток остается постоянным. Последняя фаза 4-ая – фаза отмирания - уменьшение числа клеток за счет истощения питательной среды.
Метаболиты, обычно малые молекулы - это промежуточные соединения или продукты метаболизма. Различают первичные и вторичные метаболиты. Первичные метаболиты (аминокислоты, нуклеотиды) непосредственно вовлечены в процессы роста и развития клеток. Вторичные метаболиты (антибиотики, алкалоиды, стероиды, пигменты) не являются необходимыми для роста клеток.
В отличие от синтеза первичного метаболита, который происходит одновременно с ростом и размножением культуры , для продуцента вторичных метаболитов принято говорить о трофофазе (когда культура растет и размножается) и идиофазе (когда рост замедляется или останавливается и начинается синтез продукта). Механизмы переключения путей метаболизма с первичного на вторичный не ясны.
Рис. 1. Сравнительная характеристика кривых роста микроорганизмов.
I - кривая роста микроорганизмов при получении первичных метаболитов: 1 – lag-фаза, 2 – фаза экспоненциального роста или log-фаза, 3 – стационарная фаза, 4 – фаза отмирания. II – кривая роста микроорганизмов при получении вторичных метаболитов (более короткая фаза роста и более длительная стационарная фаза).
Микроорганизмы, производящие вторичные метаболиты, вначале проходят стадию быстрого роста, трофофазу, во время которой синтез вторичных метаболитов незначителен. По мере замедления роста из-за истощения одного или нескольких необходимых питательных веществ в культуральной среде микроорганизм переходит в идиофазу; именно в этот период синтезируются идиолиты (вторичные метаболиты). Так антибиотики наиболее быстро накапливаются в среде в период стационарной фазы, когда биомасса почти не возрастает . Идиолиты не играют явной роли в процессах метаболизма, они вырабатываются клетками для адаптации к условиям окружающей среды, например, для защиты. Их синтезируют не все микроорганизмы, а в основном нитчатые бактерии, грибы и спорообразующие бактерии.
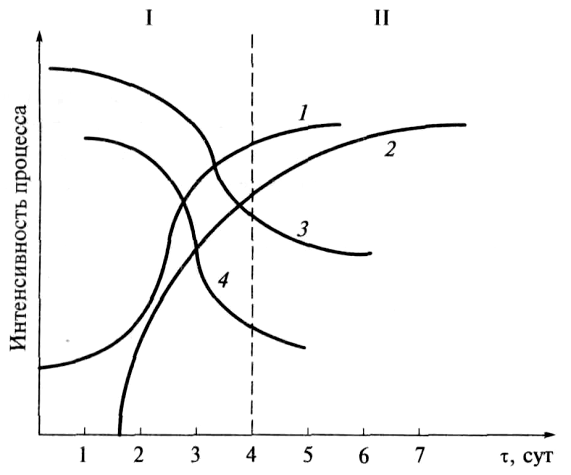
Рис. 2. Особенности ферментационного процесса при получении антибиотиков:
1 – трофофаза, II – идиофаза, 1 – биомасса клеток, 2 – антибиотик, 3 – углеводы, 4 – источники азота.
Особенности культурального роста микроорганизмов-продуцентов необходимо учитывать при производстве. Например, в случае антибиотиков большинство микроорганизмов в процессе трофофазы чувствительно к собственным антибиотикам, однако во время идиофазы они становятся к ним устойчивыми.
Чтобы уберечь микроорганизмы, продуцирующие антибиотики, от самоуничтожения, важно быстро достичь идиофазы и затем культивировать микроорганизмы в этой фазе. Это достигается путем варьирования режимов культивирования и составом питательной среды на стадиях быстрого и медленного роста.
Отправить свою хорошую работу в базу знаний просто. Используйте форму, расположенную ниже
Студенты, аспиранты, молодые ученые, использующие базу знаний в своей учебе и работе, будут вам очень благодарны.
Размещено на http://www.allbest.ru/
Министерство сельского хозяйства Российской Федерации
Департамент научно технологической политики и образования
Федеральное государственное бюджетное образовательное учреждение высшего образования
«Волгоградский государственный аграрный университет»
Факультет: Биотехнологий и ветеринарной медицины
Кафедра: «Ветеринарно санитарная экспертиза, заразные болезни и морфология»
ДОКЛАД
Дисциплина: «Биотехнология»
на тему: «Первичные и вторичные метаболиты микроорганизмов»
Выполнила:
Понышева Е.С.
Проверил:
Спивак Марина Ефимовна
Волгоград 2018 г
Биотехнология получения первичных метаболитов
Первичные метаболиты - низкомолекулярные соединения, необходимые для роста микроорганизмов: одни из них являются строительными блоками макромолекул, другие - участвуют в синтезе коферментов. Среди наиболее важных для промышленности первичных метаболитов можно выделить ферменты, аминокислоты, витамины.
Производство аминокислот
В промышленности аминокислоты получают:
1) гидролизом природного белоксодержащего сырья; 2) химическим синтезом; 3) микробиологическим синтезом; 4) биотрансформацией предшественников аминокислот с помощью микроорганизмов или выделенных из них.
Наиболее перспективен и экономически выгоден микробиологический синтез аминокислот. Преимущество его состоит в возможности получения L-аминокислот на основе возобновляемого сырья. Среди продуцентов аминокислот используются дрожжи (30 %), актиномицеты (30 %), бактерии (20 %). Brevibacterium flavum и Corynebacterium glutamicum более трети сахаров превращают в лизин. Для селекции продуцентов используются микроорганизмы, относящиеся к родам Micrococcus, Brevibacterium, Corynebacterium, Arthrobacter.
Производство витаминов
Витамины - группа незаменимых органических соединений различной химической природы, необходимых любому организму в ничтожных концентрациях и выполняющих в нем каталитические и регуляторные функции. Способностью к синтезу витаминов обладают лишь автотрофные организмы. Микробиологическим способом можно получить практически все известные витамины. Однако экономически более целесообразно получать витамины выделением из природных источников или с помощью химического синтеза. С помощью микроорганизмов целесообразно получать сложные по строению витамины: в-каротин, В2, В12 и предшественники витамина D.
Производство органических кислот
В настоящее время биотехнологическими способами получают в промышленных масштабах ряд органических кислот. Из них лимонную, глюконовую, кетоглюконовую и итаконовую кислоты получают лишь микробиологическим способом, молочную, салициловую и уксусную - как химическим, так и микробиологическим, яблочную - химическим и энзиматическим путем. Уксусную кислоту продуцируют Aсеtobacter и Gluconobacter, лимонную - Aspergillus niger, Aspergillus wentii, молочную - Lactobacillus delbrueckii.
Биотехнология получения вторичных метаболитов
Принципы получения основаны на особенностях их образования клетками микроорганизмов. Биосинтез вторичных метаболитов фазоспецифичен и происходит после завершения стадии роста, в идиофазе, благодаря чему их и называют идиолитами.
Получение антибиотиков
Антибиотики - самый большой класс фармацевтических соединений, синтез которых осуществляется микробными клетками. К классу относятся противогрибковые агенты, противоопухолевые лекарства и алкалоиды. Они используются в растениеводстве, животноводстве, ветеринарии, пищевой промышленности, медицине.
Существует несколько способов получения как природных, так и полусинтетических антибиотиков:
1) ферментация микроорганизма-продуцента с подходящим пред-шественником, что индуцирует синтез антибиотиков в идиофазе;
2) использование блокированных мутантов. У которых блокирован синтез нужного антибиотика. Используя низкую субстратную специфичность ферментов и вводя аналоги предшественников антибиотика, их переводят в аналоги самого антибиотика.
Этот процесс называется биосинтез, или мутасинтез:
а) предполагается последовательность реакций, ведущая к синтезу антибиотика;
б) отсутствие синтеза антибиотика у «блокированного» мутанта; в) синтез модифицированного антибиотика после введения аналога предшественника (D*)
Получение промышленно важных стероидов
Стероиды - большая группа биологически важных соединений, среди которых - половые гормоны, сердечные гликозиды, желчные кислоты, витамины, алкалоиды, регуляторы роста растений. В основе стероидов лежит скелет пергидроциклопентанофенантрена.
Биотрансформация - реакции превращения исходных органических соединений (предшественников) в целевой продукт с помощью клеток живых организмов или ферментов, выделенных из них. Способность клеток микроорганизмов к высокоспецифичной биотрансформации используется в производстве стероидов. Использование абсолютной стереоспецифичности и субстратной специфичности ферментов клеток позволило разработать условия осуществления множества химических реакций для структурных перестроек стероидов. В результате были получены новые соединения с лучшими фармакологическими свойствами.
Ферменты
Ферменты -- биологические катализаторы. Они катализируют тысячи химических реакций, из которых слагается метаболизм микроорганизма. В настоящее время известно около двух тысяч ферментов.
Ферменты представляют собой белки с молекулярной массой от 10000 до нескольких миллионов. Название ферменту дается по веществу, на которое он действует с изменением окончания на «аза». Например, целлюлаза катализирует гидролиз целлюлозы до целлобиозы, уреаза катализирует гидролиз мочевины (urea) до аммиака и СО2 и т. п. Однако чаще фермент получает название, которое указывает на природу катализируемой, им химической реакции.
Современная классификация ферментов также строится с учетом природы катализируемых ими реакций. Согласно разработанной комиссией по ферментам Международного биохимического союза классификации, они подразделяются на шесть главных классов.
Оксидоредуктазы -- это ферменты, катализирующие окислительно-восстановительные реакции. Они играют большую роль в процессах биологического получения энергии. К ним относятся дегидрогеназы (НАД, НАДФ, ФАД), цитохромы (b, с, с1 а, а3)г ферменты, участвующие в переносе водорода, электронов и кислорода, и др.
Трансферазы. Катализируют перенос отдельных радикалов, частей молекул или целых атомных группировок от одних соединений к другим. Например, ацетилтрансферазы переносят остатки уксусной кислоты -- СН3СО, а также молекул жирных кислот; фосфотрансферазы, или киназы, обусловливают перенос остатков фосфорной кислоты Н2Р032-. Известны многие другие трансферазы (аминотраисферазы, фосфорилазы и т. д.).
Гидролазы катализируют реакции расщепления и синтеза таких сложных соединений, как белки, жиры и углеводы, с участием воды. К этому классу относятся протеолитические ферменты (или пептидгидролазы), действующие на белки или пептиды; гидролазы глюкозидов, осуществляющие каталитическое расщепление углеводов и глюкозидов (в-фруктофуранозидаза, б - глюкозидаза, а - и в-амилаза, в-галактозидаза и др.); эстеразы, катализирующие расщепление и синтез сложных эфиров (липазы, фосфатазы).
Лиазы включают в себя ферменты, катализирующие отщепление от субстратов определенных химических групп с образованием двойных связей или присоединение отдельных групп или радикалов к двойным связям. Так, пируватдекарбоксилаза катализирует отщепление С02 от пировиноградной кислоты:
К лиазам относится также фермент альдолаза, расщепляющий шестиуглеродную молекулу фруктозо-1,6-дифосфата на два трехуглеродных соединения. Альдолаза имеет большое значение в процессе обмена веществ.
Изомеразы осуществляют превращение органических соединений в их изомеры. При изомеризации происходит внутримолекулярное перемещение атомов, атомных группировок, различных радикалов и т. п. Изомеризации подвергаются углеводы и их производные, органические кислоты, аминокислоты и т. д. Ферменты этой группы играют большую роль в ряде процессов метаболизма. К ним относятся триозофосфатизомераза, глюкозофосфатизомераза и др.
Лигазы катализируют синтез сложных органических соединений из простых. Например, аспарагинсинтетаза осуществляет синтез амида аспарагина из аспарагиновой кислоты и аммиака с обязательным участием аденозинтрифосфорной кислоты (АТФ), дающей энергию для этой реакции:
Аспарагиновая кислота + NH3 + АТФ -* аспарагин + АДФ + Н3Р04
К группе лигаз относятся также карбоксилазы, катализирующие присоединение С02 к различным органическим кислотам. Например, фермент пируваткарбоксилаза катализирует синтез щавелевоуксусной кислоты из пировиноградной и С02.
В соответствии со строением ферменты делятся на два больших класса:
1) представляющие собой простые белки,
2) являющиеся сложными белками.
К первому классу относятся гидролитические ферменты, ко второму, более многочисленному классу,-- ферменты, осуществляющие функции окисления и участвующие в реакциях переноса различных химических групп. Ферменты второго класса, кроме белковой части, называемой апоферментом, имеют и небелковую группу, определяющую активность фермента, -- кофактор. В отдельности эти части (белковая и небелковая) лишены ферментативной активности. Они приобретают характерные свойства ферментов только после соединения. Комплекс апофермента с кофактором называется холоферментом.
Кофакторами могут быть либо ионы металлов (Fe, Си, Со, Zn, Мо и др.), либо сложные органические соединения, называемые коферментами, либо те и другие. Коферменты обычно играют роль промежуточных переносчиков электронов, атомов, групп, которые в результате ферментативной реакции перемещаются с одного соединения на другое. Некоторые коферменты прочно связаны с ферментным белком; их называют простетической группой фермента. Многие коферменты или идентичны определенным витаминам группы В, или являются их производными.
К коферментам относятся, например, активные группы дегидрогеназ -- никотинамидадениндинуклеотид (НАД) или никотинамидадениндинуклеотидфосфат (НАДФ). В эти коферменты входит никотиновая кислота -- один из витаминов группы В. Витамины имеются в составе и других коферментов. Так, тиамин (витамин В1) входит в состав тиаминпирофосфокиназы, участвующей в обмене пировиноградной кислоты, пантотеновая кислота является составной частью кофермента А, а рибофлавин (витамин В2) представляет собой простетическую группу флавопротеиновых ферментов. Важное значение витаминов в питании живых организмов обусловлено именно тем, что они находятся в составе коферментов.
По современным представлениям, ферменты ускоряют химические реакции, понижая свободную энергию активации (количество энергии, необходимое для перевода при данной температуре всех молекул одного моля вещества в активированное состояние).
Главное свойство ферментов, отличающее их от других катализаторов, -- это специфичность катализируемых ими ферментативных реакций. Каждый фермент катализирует только одну определенную реакцию.
В связи с высокой специфичностью ферментативных реакций полагают, что участок молекулы фермента, называемый каталитическим центром, к которому присоединяется молекула субстрата, обладает определенной пространственной конфигурацией, которая «впору» лишь молекуле субстрата и не соответствует никаким другим молекулам.
Активность ферментов зависит от различных факторов: относительной концентрации фермента и субстрата температуры, pH и др. Для каждого фермента существует свой оптимум температуры и pH. Многие ферментативные реакции обратимы, хотя активность фермента редко бывает одинаковой в обоих направлениях.
Несмотря на незначительные размеры, каждая клетка микроорганизма может производить множество отличных друг от друга ферментов, обладающих различными функциями. Обычно ферменты, участвующие в метаболизме, содержатся в клетке организма и поэтому называются внутриклеточными ферментами, или эндоферментами. Некоторые ферменты выделяются клетками микроорганизмов в окружающую среду и называются внеклеточными ферментами, или экзоферментами. Как правило, во внешнюю среду выделяются гидролитические ферменты, разлагающие соединения с большой молекулярной массой, которые не могут проникнуть в клетку микроорганизма. Продукты же разложения легко поглощаются клеткой и используются ею в качестве питательных веществ.
Ферменты играют значительную роль в питании микроорганизмов. Большое число разнообразных ферментов, синтезируемых клетками микроорганизмов, позволяет им использовать для питания многочисленные соединения (углеводы, белки, жиры, воска, нефть, парафины и т. д.) путем их расщепления.
Производство аминокислот
Производство аминокислот в мире постоянно растет и в настоящее время составляет около 400 тыс. тонн/год, хотя потребность в них оценивается гораздо выше. Как уже отмечалось, недостаток в рационе аминокислот (особенно, незаменимых) отрицательно сказывается на росте и развитии. Так, добавка к кормам животных нескольких долей % дефицитной кислоты может повысить кормовую ценность белка более чем в два раза. Из всех возможных способов получения аминокислот (химическим путем, микробиологическим и др.) предпочтение отдается микробиологическому: хотя организацию микробного производства нельзя назвать простой, ее преимущество состоит в синтезе оптически чистых (L-аминокислот), тогда как при химическом синтезе получается рацемическая смесь L- и D-аминокислот, которую трудно разделить. Микробный синтез аминокислот основан на культивировании строго определенного продуцента целевой кислоты в среде заданного состава при строго определенных параметрах ферментации. Продуцентами являются штаммы бактерий, полученные мутантной селекцией или с помощью методов генной инженерии. Бактерии-мутанты, с одной стороны, утратили способность самостоятельно синтезировать некоторые вещества, а с другой стороны, приобрели способность к сверхсинтезу целевой аминокислоты. Уже к 70-м годам прошлого века были получены микробы-суперпродуценты из родов Brevibacterium,Corynebacterium, Micrococcus и др. с помощью которых возможно производить все известные аминокислоты. В настоящее время имеются суперпродуценты, у которых количество синтезируемого специфического белка достигает 10-50 % (здесь важнейшую роль играют многокопийные плазмиды, несущие встроенные гены).
Технология получения аминокислот базируется на принципах ферментации продуцентов и выделения первичных метаболитов, т. е. размножают маточную культуру вначале на агаризованной среде в пробирках, затем - на жидкой среде в колбах, инокуляторах и посевных аппаратах, а затем - в основных ферментаторах. Если аминокислота предусмотрена в качестве добавки к кормам, то биотехнологический процесс кормового продукта включает следующие стадии: ферментацию, стабилизацию аминокислоты в культуральной жидкости перед упариванием, вакуум-упаривание, стандартизацию упаренного раствора при добавлении наполнителя, высушивание и упаковку готового продукта, в котором должно содержаться не более 10 % основного вещества. Если же аминокислота используется в качестве лекарственного препарата, в этом случае получают изолированные чистые кристаллы, которые высушивают под вакуумом и упаковывают.
Известны два способа получения аминокислот: одноступенчатый и двухступенчатый. Согласно первому способу, например, мутантный ауксотрофный штамм - продуцент аминокислоты - культивируют на оптимальной для биоситеза среде.
В двухступенчатом способе микроб-продуцент культивируют в среде, где он получает и синтезирует все необходимые ингредиенты для последующего синтеза целевого продукта. Схема двухступенчатого процесса может быть представлена в следующем виде: Если ферменты биосинтеза аминокислоты накапливаются внутриклеточно, то после 1-й ступени клетки сепарируют, дезинтегрируют и применяют клеточный сок. В других случаях для целей биосинтеза целевых продуктов применяют непосредственно клетки.
Глутаминовая кислота - это первая аминокислота, полученная микробиологическим путем. Мутантов, обеспечивающих сверхсинтез этой кислоты, не получено, а «перепроизводство» этой аминокислоты связано с особыми условиями, при которых нарушается синтез мембранных фосфолипидов. Глутаминовая кислота синтезируется исключительно культурами Corynebacterium glutamicum и Brevibacterium flavum. Субстратами для ее получения являются глюкоза и уксусная кислота, а в начале 60-х гг. прошлого столетия использовали и н-парафины. Особые условия для роста культур создаются добавлением к культуральной жидкости пенициллина, который подавляет синтез клеточной стенки, или уменьшением (по сравнению с оптимальной) концентрации биотина (витамина В7) в среде, который индуцирует структурно-функциональные изменения в клеточной мембране, благодаря чему увеличивается ее проницаемость для глутаминовой кислоты, выходящей из клетки в культуральную жидкость. Натриевая соль глутаминовой кислоты широко применяется в пищевой промышленности для улучшения вкуса продуктов питания в консервированном и замороженном виде.
Витамины
Витамины - низкомолекулярные органические вещества, которые имеют биологическую активность. В естественной среде источниками этих представителей БАВ являются растения и микроорганизмы. В промышленности витамины получают в основном химическим синтезом. Однако микробиологическое производство этих соединений также имеет место. Так, например, менахиноны и кобаламины - продукт исключительно микробный. Микробиологическим путем получают всего несколько витаминов: В12 (цианокобаламин), В2 (рибофлавин), витамин С и эргостерин.
Довольно перспективным направлением в биотехнологии является микробиологический синтез биотина, который применяется в животноводстве в качестве кормовой добавки. В настоящее время для получения биотина прибегают к химическому синтезу.
Витамин В12
Мировая продукция витамина В12 составляет 9-11 тыс. кг в год. Из них около половины используется на медицинские цели, остальное количество - в животноводстве как кормовые добавки.
Природные продуценты витамина В12 обнаружены среди пропионовокислых бактерий р. Propionibacterium, которые синтезируют от 1 до 8 мг/л этого витамина. С помощью селекционногенетических методов получен мутант P. shermanii M82, который дает до 60 мг/л продукта.
Продуцент B. rettgerii также используется для микробиологического синтеза В12. В качестве активных продуцентов витамина В12 используют также актиномицеты и родственные микроорганизмы: путем мутаций и ступенчатого отбора получен штамм Nocardia rugosa, накапливающий до 18 мг/л В12.
Активные продуценты В12 обнаружены среди представителей Micromonospora.
Высокой природной продуктивностью обладают представители метанотрофов Methanosarcina, Methanococcus, среди которых выделен штамм Methanococcus halophilus, обладающий самым высоким среди природных штаммов уровнем продукции - 16 мг на 1 г биомассы.
В значительных количествах В12 синтезируют анаэробные бактерии р. Clostridium, что особенно эффективно для технологии.
Известны активные продуценты В12 среди Pseudomonas. У P. denitricans получен мутант, дающий на оптимизированной среде до 59 мг/л. Штамм запатентован фирмой «Merck» для промышленного получения В12.
В России наиболее широкое применение имеют Propionibacterium freudenreichii. Их культивируют на кукурузном экстракте и глюкозе в анаэробных условиях 72 ч для роста культуры. Во 2й фазе синтеза в ферментер вносят предшественник - специфическое азотистое основание и проводят ферментацию еще 72 ч. Затем экстрагируют В12 из биомассы бактерий и очищают его химическим способом. Такой витамин применяют в медицинских целях.
Для нужд животноводства В12 получают с использованием смешанной культуры, содержащей бактерии Methanosarcina barkeri, Methanobacterium formicum. Содержание В12 в культуре достигает 6,5 мг/г сухой биомассы.
Рибофлавин
Витамин В2 в природе продуцируется растениями, дрожжами, мицелиальными грибами, а также некоторыми бактериями.
Среди прокариот известными продуцентами флавинов являются микобактерии и ацетобутиловые бактерии. Из актиномицетов - Nocardia eritropolis. метаболит аминокислота витамин фермент
Среди мицелиальных грибов - Aspergillus niger и Eremothecium ashbyi.
Рибофлавин микробиологического производства используется исключительно как кормовая добавка в животноводстве. Основным продуцентом кормового рибофлавина является Eremothecium ashbyi, который культивируют на кукурузной или соевой муке с минеральными добавками. Культивирование ведут до появления спор. Его лучшие продуценты, полученные с помощью мутаций и ступенчатого отбора продуцируют до 600 мг/л продукта. Затем культуральную жидкость выпаривают и используют в виде порошковой добавки к кормам в животноводстве.
Эргостерин
Эргостерин - исходный продукт производства жирорастворимого витамина D2. Эргостерин является также основным стерином дрожжей, поэтому данные микроорганизмы - основной источник для селекционных работ. Так, Saccharomyces carlbergensis дает до 4,3 мг/л, S. ellipsoideus - 1,5 мг/л, Rhodotorula glutinis - 1 мг/л, Candida utilis - 0,5 мг/л продукта.
Наиболее широко в производстве используют дрожжи Saccharomyces carlbergensis, а также S. cerevisiae.
В последние годы появились сообщения о промышленном производстве витамина С. Сообщается о конструировании генноинженерными методами продуцента: гены Corynebacterium перенесли в Erw. herbicola.
В рекомбинантном штамме объединены способность эрвиний превращать глюкозу в глюконовую кислоту со способностью коринебактерий превращать последнюю в гулоновую кислоту, которую химическим способом превращают в аскорбиновую кислоту.
Каротиноиды
Каротиноиды - обширная группа природных пигментов, которые синтезируют хемо и фототрофами: прокариотами, мицелиальными грибами и дрожжами, водорослями и высшими растениями.
Каротиноиды, синтезируемые микроорганизмами, существуют в клетке в свободной форме, а также в виде гликозидов, в виде эфиров жирных кислот и как каротинобелковые комплексы. Ценность этих соединений для млекопитающих заключается в том, что это источник витамина А.
До настоящего времени не созданы истинные продуценты каротиноидов, а каротиноиды микроорганизмов выделяют из микроорганизмов преимущественно путем экстракции.
В настоящее время описано около 500 различных каротиноидов. Структурно каротиноиды представляют собой хромофор (или ядро), соединенное с изопреновыми остатками. Отличительной чертой хромофора является наличие сопряженных двойных связей. От числа этих связей зависит интенсивность окраски каротиноидов. Так, алифатические каротиноиды, содержащие не более 5 сопряженных связей - соединения неокрашенные.
Среди них наибольшее значение имеют фитоин и фитофлуин. Синтезируемые Neurospora crassa каротиноиды имеют 9 сопряженных связей и имеют яркожелтое окрашивание. С увеличением двойных связей окраска усиливается до красной и фиолетовой.
Высшие каротиноиды имеют в молекуле до 45-50 атомов углерода. К таким каротиноидам относятся сарцинаксантин, продуцируемый Sarcina lutea.
Некоторые каротиноиды могут иметь в своем составе терминальную группировку как алеуреаксантин гриба Aleuria aurantia.
Другие каротиноиды имеют терминальную гидроксигруппу как гидроксифлеиксантин Blakeslea trispora.
Расположение каротиноидов в клетках микроорганизмов различно. Так, у фототрофных микроорганизмов каратиноиды сосредоточены в фотосинтезирующем аппарате. У хемотрофных - ассоциированы с клеточной мембраной. У некоторых (Micrococcus radiodurans) - локализованы в клеточной стенке. У грибов - в липидных глобулах цитоплазмы.
Каратиноиды выполняют в клетке роль антиоксидантов и защищают ее от явления перекисного окисления. Кроме того, каратиноиды являются фотоловушками, собирающими световую энергию.
Получение каротиноидов в промышленности
Традиционные методы получения каратиноидов сводятся к гомогенизации биомассы и экстракции каратиноидов полярными растворителями (ацетон, метанол). Индивидуальные каратиноиды получают путем разделения методом тонкослойной хроматографии на силикагеле. Следующим по распространенности является химический синтез каратиноидов.
Традиционными продуцентами микробного синтеза каратиноидов являются бактерии, мицелиальные грибы и дрожжи. Из фототрофных бактерий можно отметить Chloroexus и некоторые виды Rhodopseudomonas. Эта группа бактерий интересна тем, что у них в зависимости от интенсивности освещения можно регулировать выход каратиноидов.
Антибиотики
Традиционные представления об антибиотиках, или антибиотических веществах, связаны с их широким применением в современной медицине и ветеринарии. Некоторые антибиотические препараты применяют как стимуляторы роста животных, в борьбе с болезнями растений, при консервировании пищевых продуктов и в научных исследованиях (в области биохимии, молекулярной биологии, генетике, онкологии).
Современное определение термина «антибиотик» принадлежит М.М. Шемякину и А.С. Хохлову (1961), которые предложили считать антибиотическими веществами все продукты обмена любых организмов, способные избирательно убивать или подавлять рост и развитие микроорганизмов (бактерии, грибы, вирусы и др.), а также некоторых злокачественных новообразований.
В соответствии с классификацией, в основе которой лежит химическое строение, все описанные антибиотики можно разделить на следующие группы:
1) ациклические соединения (исключая жирные кислоты и терпены);
2) алициклические соединения (в том числе тетрациклины);
3) ароматические соединения;
4) хиноны;
5) кислородсодержащие гетероциклы;
7) пептиды.
Полностью химическая структура установлена для одной трети известных антибиотиков, и только половина из них может быть получена химическим путем. Поэтому микробиологический способ получения антибиотических средств очень актуален.
Синтез микроорганизмами антибиотиков - одна из форм проявления антагонизма; связан с определенным характером обмена веществ, возникшим и закрепленным в ходе его эволюции, т. е. это наследственная особенность, выражающаяся в образовании одного и более определенных, строго специфичных для каждого вида антибиотических веществ. Воздействуя на постороннюю микробную клетку, антибиотик вызывает значительные нарушения в ее развитии. Некоторые из антибиотиков способны подавлять синтез оболочки бактериальной клетки в период размножения, другие воздействуют на ее цитоплазматическую мембрану, изменяя проницаемость, часть из них является ингибиторами реакций обмена веществ. Несмотря на интенсивное изучение механизма действия различных антибиотиков, далеко не полностью выявлено их влияние на обмен веществ даже в клетках бактерий, которые являются основными объектами исследования.
В настоящее время описано более 3000 антибиотиков, но только 150 из них нашли практическое применение. Ниже будет рассмотрена технология производства тех из них, которые относятся к продуктам метаболизма микроорганизмов и нашли применение в сельском хозяйстве в виде соответствующих добавок к кормам (кормовые антибиотики) и в качестве средств защиты растений.
В течение многих лет антибиотики используют как стимуляторы роста сельскохозяйственных животных и птицы, как средства борьбы с заболеваниями растений и посторонней микрофлорой в ряде бродильных производств, как консерванты пищевых продуктов. Их применение в сельском хозяйстве приводит к снижению заболеваемости и смертности, прежде всего молодняка, и к ускорению роста и развития животных и птицы, способствует сокращению количества потребляемых кормов в среднем на 5 10 %. При применении антибиотиков в свиноводстве от каждой 1000 свиней дополнительно получают 100 120 ц мяса, от 1000 кур несушек - до 15 тыс. яиц в год. Механизм стимулирующего действия антибиотических веществ также нельзя считать полностью выясненным. Видимо, стимулирующий эффект воздействия низких концентраций антибиотиков на организм животного связан, в основном, с двумя факторами: воздействием на микрофлору кишечника или непосредственным влиянием на организм животного. В первом случае антибиотики способствуют увеличению числа полезных микроорганизмов, синтезирующих витамины и преобладающих над патогенными формами. Они снижают число вредных для организма животного микробов, использующих биологически активные вещества и образующих токсины, имеющие патогенные или условно патогенные формы. Антибиотики оказывают влияние на микроорганизмы, присутствующие в кишечнике, способствуя созданию устойчивых штаммов, менее вредных для животного, изменяют метаболизм присутствующих микробов. Они вызывают перемещение микроорганизмов в кишечнике животного; под их влиянием наблюдается снижение субклинических инфекций, часто замедляющих развитие молодняка, снижение рН содержимого кишечника, уменьшение поверхностного натяжения клеток организма, что способствует ускорению их деления.
Во втором случае в организме животного наблюдается синергизм действия гормонов, растет количество ростовых гормонов, ускоряется процесс потребления пищи, растет приспособляемость организма к неблагоприятным условиям. Под влиянием антибиотиков снижается потребность животного в витаминах, увеличивается синтез витаминов тканями, стимулируется синтез сахаров и витамина А из каротина, растет скорость синтеза ферментов, образуется меньше побочных продуктов. Кроме того, растет абсорбционная способность тканей, стимулируется потребление метаболитов.
Кормовые антибиотики применяют в виде неочищенных препаратов, которые представляют собой высушенную биомассу продуцента, содержащую помимо антибиотика аминокислоты, ферменты, витамины группы В и другие биологически активные вещества. Получаемые препараты стандартизуют по активности или количеству входящего в их состав основного вещества, учитывая или не учитывая присутствие в нем витамина B12. Все производимые кормовые антибиотики:
а) не используются в терапевтических целях и не вызывают перекрестной резистенции бактерий к антибиотикам, применяемым в медицине;
б) практически не всасываются в кровь из пищевого тракта;
в) не меняют своей структуры в организме;
г) не обладают антигенной природой, способствующей возникновению аллергии.
При длительном применении одного и того же препарата существует опасность возникновения антибиотикоустойчивых микроорганизмов. Для ее предупреждения периодически меняют используемые антибиотические вещества или применяют смесь антибиотиков, позволяющую поддерживать первоначально достигнутый эффект на необходимом уровне.
В СССР уже в течение нескольких десятков лет выпускаются кормовые препараты на основе хлортетрациклина - биовит, или биомицин кормовой, с различным начальным содержанием антибиотика и витамина B12. В настоящее время производство кормовых антибиотиков основывается и на других препаратах немедицинского назначения, таких, как бацитрацин, гризин, гигромицин Б и др.
В течение последних 20 лет антибиотики используют как средство борьбы с различными фитопатогенами. Источники заражения растений фитопатогенными микроорганизмами различны. Не составляют исключения и семена самого растения, идущие на посев. Воздействие антибиотического вещества сводится к задержанию роста или гибели фитопатогенных микроорганизмов, находящихся в семенах и вегетативных органах растения.
Получаемые препараты должны быть высокоактивными против возбудителя заболевания в окружающей растение среде, безвредными в применяемых для растения дозах, способными сохранять антибиотическую активность в течение необходимого времени и легко проникать в соответствующие ткани растения.
К числу антибиотических веществ, нашедших наиболее широкое применение в борьбе с фитопатогенами, относятся прежде всего фитобактериомицин, трихотецин и полимицин.
Применение антибиотиков в пищевой промышленности позволяет в значительной степени снизить длительность термообработки различных продуктов питания при их консервировании. А это, в свою очередь, обеспечивает большую сохранность присутствующих в них биологически активных веществ, вкусовых качеств, консистенции продуктов. Используемые антибиотики воздействуют в основном на клостридиальные и термофильные бактерии, устойчивые к нагреванию. Наиболее эффективным антибиотиком при консервировании овощей общепризнан в РФ и за рубежом низин. Он не токсичен для человека и позволяет вдвое уменьшить время термообработки овощей. Технология производства любых антибиотиков немедицинского назначения, кроме тех, что используются в пищевой и консервной промышленности, строится по единой схеме, предусматривающей все стадии асептического промышленного культивирования штамма продуцента и биосинтез антибиотика, предварительную обработку культурной жидкости, ее вакуум упаривание, сушку и стандартизацию готового продукта путем смешения с необходимым количеством наполнителя. В качестве последних обычно используют отруби, жмыхи различных культур и другие вещества органической и неорганической природы.
Динамика накопления антибиотика в культуральной жидкости в подавляющем большинстве случаев имеет типичный вид зависимости, характерный для биосинтеза вторичных метаболитов, т. е. максимум образования биомассы во времени предшествует максимуму антибиотикообразования. Поэтому на первых этапах культивирования целью производства является накопление необходимого количества биомассы (антибиотик при этом практически отсутствует). Биосинтез антибиотика происходит на второй стадии производственного культивирования в основных ферментерах, причем время биосинтеза может в 2-3 раза превышать время, затрачиваемое на культивирование штамма продуцента.
Использованная литература
1. Биотехнология: практикум / С. А. Акимова, Г. М. Фирсов. - Волгоград: ФГБОУ ВПО Волгоградский ГАУ, 2013. - 108 с.
2. Шевелуха В.С., Калашникова Е.А., Воронин Е.С. и др. Сельскохозяйственная биотехнология. - Учебник. М.: Высшая школа, 2008. - 469
3. Калашникова Е.А., Кочиева Е.З., Миронова О.Ю. Практикум по сельскохозяйственной биотехнологии, М.:КолосС, 2006, 149 с.
Размещено на Allbest.ru
Подобные документы
Биосинтез алкалоидов, изопреноидов и фенольных соединений. Эмпирическая (тривиальная), биохимическая и функциональная классификации вторичных метаболитов, основные группы, закономерности строения. Ацетатно-малонатный путь синтеза фенольных соединений.
курсовая работа , добавлен 21.10.2014
Производство продуктов микробного синтеза первой и второй фазы, аминокислот, органических кислот, витаминов. Крупномасштабное производство антибиотиков. Производство спиртов и полиолов. Основные типы биопроцессов. Метаболическая инженерия растений.
курсовая работа , добавлен 22.12.2013
Биообъект как средство производства лекарственных, диагностических и профилактических препаратов; требования, классификация. Иммобилизация ферментов, используемые носители. Применение иммобилизованных ферментов. Биологическая роль витаминов, их получение.
контрольная работа , добавлен 04.11.2015
Антиоксиданты и ингибиторы радикальных и окислительных процессов. Перекисное окисление липидов. Биологическое действие витаминов. Исследование биологической роли активированных кислородных метаболитов. Определение концентрации белка по методу Бредфорда.
курсовая работа , добавлен 12.11.2013
Биотехнология как совокупность методов использования живых организмов и биологических продуктов в производственной сфере. Клонирование как бесполое размножение клеток растений и животных. Использование микроорганизмов для получения энергии из биомассы.
реферат , добавлен 30.11.2009
Общая характеристика пищевых кислот. Биолого-химическая характеристика растений. Подготовка растительного материала. Определение содержания органических кислот в сахарной свекле, картофеле, репчатом луке и моркови. Рекомендуемые регионы возделывания.
курсовая работа , добавлен 21.04.2015
Антибиотики – продукты жизнедеятельности микроорганизмов, их модификации, обладающие высокой физиологической активностью по отношению к бактериям: классификация, химическое строение, группы. Методы выделения антибиотиков из культуральной жидкости.
контрольная работа , добавлен 12.12.2011
Роль дрожжей в природных экосистемах, перспективы их использования в различных разработках. Морфология и метаболизм дрожжей, вторичные продукты. Методы приготовления препаратов микроорганизмов. Биотехнологии, промышленное использование дрожжей.
курсовая работа , добавлен 26.05.2009
История открытия витаминов. Влияние на организм, признаки и последствия недостатка, основные источники витаминов А, С, D, Е. Характеристика витаминов группы В: тиамина, рибофлавина, никотиновой и пантотеновой кислот, пиридоксина, биотина, холина.
презентация , добавлен 24.10.2012
Изучение функций белков - высокомолекулярных органических веществ, построенных из остатков аминокислот, которые составляют основу жизнедеятельности всех органов. Значение аминокислот - органических веществ, которые содержат амин- и карбоксильную группы.
Вопросы:
1. Метаболизм. Первичный и вторичный метаболизм.
2. Особенности клеточного метаболизма.
3. Клетка как открытая термодинамическая система. Виды работы в клетке. Макроэргические соединения.
4. Ферменты: структура (простатическая группа, коферменты) и функции. Классификация ферментов
5. Вторичные метаболиты, классификация, роль в жизни растения, использование человеком. Образование пигментов, токсинов, ароматических веществ микроорганизмами (грибы, бактерии).
1. Метаболизм (обмен веществ) – совокупность всех химических реакций, идущих в клетке.
Метаболиты – продукты обмена веществ.
На образование в клетках гормонов (этилена, подавляют синтез ИУК);
Тормозят ризогенез и растяжение клеток;
Являются фитотоксинами (оказывают антимикробное действие);
С их помощью одно растение может действовать на другое,
Дубильные вещества повышают устойчивость деревьев к грибным поражениям.
Используются в медицине для стерилизации, лекарства (салициловая кислота), в промышленности как красители.
5.2. Алкалоиды – гетероциклические соединения, содержащие в молекуле один или несколько атомов азота. Известно около 10 000 алкалоидов. Они найдены у 20% растений, наиболее распространены среди покрытосеменных (цветковых) растений. В моховидных и папоротниковидных алкалоиды встречаются редко.
Алкалоиды синтезируются из аминокислот: орнитина, тирозина, лизина, триптофана, фенилаланина, гистидина, атраниловой кислоты.
Они накапливаются в активно растущих тканях, в клетках эпидермы и гиподермы, в обкладках проводящих пучков, в млечниках. Они могут накапливаться не в тех клетках, где образуются, а в других. Например, никотин образуется в корнях, а накапливается в листьях. Обычно их концентрация составляет десятые или сотые доли процента, но хинное дерево содержит 15 – 20 % алкалоидов. Разные растения могут содержать различные алкалоиды. Алкалоиды находятся в листьях, коре, корнях, древесине.
Функции алкалоидов:
регулируют рост растений (ИУК), защищают растения от поедания животными.
Используются алкалоиды
в качестве лекарств: кодеин (от кашля), морфин (болеутоляющее), кофеин (при нервных и сердечно-сосудистых заболеваниях), хинин (от малярии). Атропин, пилокарпин, стрихнин, эфедрин ядовиты, но в малых дозах могут применяться как лекарства.;
никотин, анабазин используются для борьбы с насекомыми.
5.3. Изопреноиды (терпеноиды) – соединения, составленные из нескольких изопреновых единиц (С5Н8 – изопрен) и имеющие общую формулу (С5Н8)n. Благодаря дополнительным группам (радикалам) изопреноиды могут иметь число атомов углерода в молекуле и некратное 5. К терпенам относятся не только углеводороды, но и соединения со спиртовыми, альдегидными, кето-, лактон- и кислотными группами.
Политерпены – каучук, гутта.
Терпеноидами являются гибберелловая кислота (гиббереллины), абсцизовая кислота, цитокинины. Они не растворяются в воде. Находятся в хлоропластах, в мембранах.
Каротиноиды окрашены от желтого до красно-фиолетового цвета, образуются из ликопина, растворимы в жирах.
Изопрены входят
в состав масла хвои, шишек, цветков, плодов, древесины;
смол, латекса, эфирных масел.
Функции:
Защищают растения от бактерий, насекомых и животных; некоторые из них участвуют в закрытии ран и защищают от насекомых.
К ним относятся гормоны (цитокинины, гиббереллины, абсцизовая кислота, брассиностероиды);
Каротиноиды участвуют в световой фазе фотосинтеза, входя в ССК, и защищают хлорофилл от фотоокисления;
Стеролы входят в состав мембран, влияют на их проницаемость.
Используют как лекарства (камфора, ментол, сердечные гликозиды), витамин А. Они являются основными компонентами эфирных масел, поэтому их используют в парфюмерии, содержатся в репелентах. Входят в состав каучука. Спирт гераниол входит в состав розового масла, масла лавровых листьев, в масла цветков апельсина, жасмина, масла эвкалипта).
5.4. Синтез вторичных метаболитов
характеризуется некоторыми особенностями:
1) предшественниками для них служит небольшое количество первичных метаболитов. Например, для синтеза алкалоидов необходимы 8(?) аминокислот, для синтеза фенолов – фенилаланин или тирозин, для синтеза изопреноидов – мевалоновая кислота;
2) многие вторичные метаболиты синтезируются разными путями;
3) в синтезе участвуют специальные ферменты.
Вторичные метаболиты синтезируются в цитозоле, эндоплазматическом ретикулуме, хлоропластах.
5.5. Локализация вторичных метаболитов
Накапливаются в вакуолях (алкалоиды, фенолы, беталаины, цианогенные гликозиды, глюкозинолаты), в периплазматическом пространстве (фенолы). Изопреноиды после синтеза выходят из клетки.
Вторичные метаболиты редко распространены в тканях равномерно. Часто они накапливаются в идиобластах, млечниках, специальных каналах и ходах.
Идиобласты (от греч. Idios своеобразный) – одиночные клетки, относящиеся к выделительным тканям и отличающиеся от соседних клеток формой, строением. Находятся они в эпидерме стеблей или листьев (только в эпидерме?).
Места синтеза и локализации часто разделены. Например, никотин синтезируется в корнях, а накапливается в листьях.
Вторичные метаболиты выделяются во внешнюю среду с помощью выделительных тканей (железистых клеток, железистых волосков – трихом).
Для алкалоидов выделение нехарактерно.
Синтез и накопление в тканях вторичных метаболитов зависит главным образом от вида растения, иногда от этапа онтогенеза или возраста, от внешних условий. Распределение в тканях зависит от вида растения.
5.6. Функции вторичных метаболитов
В процессе открытия вторичных метаболитов существовали разные мнения об их значении в жизни растения. Их считали ненужными, отбросами, (их синтез) тупиком метаболизма, продуктами детоксикации ядовитых первичных метаболитов, например свободных аминокислот.
В настоящее время уже известны многие функции этих соединений, например запасающая, защитная. Алкалоиды - это запас азота для клеток, фенольные соединения могут быть дыхательным субстратом. Вторичные метаболиты защищают растения от биопатогенов. Эфирные масла, представляющие собой смесь вторичных метаболитов, обладают антимикробными и антифунгицидными свойствами. Некоторые вторичные метаболиты, распадаясь при гидролизе, образуют яд – синильную кислоту, кумарин. Вторичными метаболитами являются фитоалексины, вещества, образующиеся в ответ на инфекцию и участвующие в реакции сверхчувствительности.
Антоцианы, каротиноиды, беталаины, обеспечивающие окраску цветков и плодов, способствуют размножению растений и распространению семян.
Вторичные метаболиты останавливают прорастание семян конкурирующих видов.
Литература:
1. Мерсер Э . Введение в биохимию растений. Т. 2. – М. «Мир»,1986.
2. (ред.). Физиология растений. – М. «Академия», 2005. С. 588 – 619.
3. Харборн дж. Введение в экологическую биохимию . – М. «Мир», 1985.
4. Л. Биохимия растений. – М. «Высшая школа», 1986. С. 312 – 358.
5. , -И. Физиология древесных растений. – М. «Лесная промышленность», 1974. 421 с.
6. Л. Биохимия растений. – М. ВШ. 1986. 502 с.
A. ОПРЕДЕЛЕНИЕ
С точки зрения биогенеза антибиотики рассматривают как вторичные метаболиты. Вторичные метаболиты - это низкомолекулярные природные продукты, которые 1) синтезируются только некоторыми видами микроорганизмов; 2) не выполняют каких-либо явных функций при росте клеток и часто образуются после прекращения роста культуры; клетки, синтезирующие эти вещества, легко утрачивают способность к синтезу в результате мутаций; 3) часто образуются в виде комплексов сходных продуктов.
Первичные метаболиты - нормальные продукты обмена клетки, такие как аминокислоты, нуклеотиды, коферменты и т. д., необходимые для роста клеток.
Б. ВЗАИМОСВЯЗЬ МЕЖДУ ПЕРВИЧНЫМ
И ВТОРИЧНЫМ МЕТАБОЛИЗМОМ
Изучение биосинтеза антибиотиков состоит в установлении последовательности ферментативных реакций, в ходе которых один или несколько первичных метаболитов (или промежуточных продуктов их биосинтеза) превращаются в антибиотик. Необходимо помнить о том, что образование вторичных метаболитов, особенно в больших количествах, сопровождается значительными изменениями в первичном метаболизме клетки, поскольку при этом клетка должна синтезировать исходный материал, поставлять энергию, например в форме АТР, и восстановленные коферменты. Неудивительно поэтому, что при сравнении штаммов, синтезирующих антибиотики, со штаммами, не способными к их синтезу, обнаруживаются значительные различия в концентрации ферментов, которые прямо не участвуют в синтезе данного антибиотика.
B. ОСНОВНЫЕ БИОСИНТЕТИЧЕСКИЕ ПУТИ
Ферментативные реакции биосинтеза антибиотиков в принципе не отличаются от реакций, в ходе которых образуются первичные метаболиты. Их можно рассматривать как вариа
ции реакций биосинтеза первичных метаболитов, конечно, за некоторыми исключениями (например, есть антибиотики, содержащие нитрогруппу - функциональную группу, которая никогда не встречается у первичных метаболитов и которая образуется при специфическом окислении аминов).
Механизмы биосинтеза антибиотиков можно разделить на три основные категории.
1. Антибиотики, происходящие от единственного первичного метаболита. Путь их биосинтеза состоит из последовательности реакций, модифицирующих исходный продукт таким же образом, как и при синтезе аминокислот или нуклеотидов.
2. Антибиотики, происходящие от двух или трех разных первичных метаболитов, которые модифицируются и конденсируются с образованием сложной молекулы. Аналогичные случаи наблюдаются и в первичном метаболизме при синтезе некоторых коферментов, например фолиевой кислоты или кофермен- та А.
3. Антибиотики, берущие начало от продуктов полимеризации нескольких сходных метаболитов с образованием основной структуры, которая в дальнейшем может модифицироваться в ходе других ферментативных реакций.
В результате полимеризации образуются антибиотики четырех типов: 1) полипептидные антибиотики, образующиеся путем конденсации аминокислот; 2) антибиотики, образованные из ацетат-пропионатных единиц в реакциях полимеризации, сходных с реакцией биосинтеза жирных кислот; 3) терпеноидные антибиотики, происходящие из ацетатных единиц в пути синтеза изопреноидных соединений; 4) аминогликозидные антибиотики, образующиеся в реакциях конденсации, сходных с реакциями биосинтеза полисахаридов.
Эти процессы сходны с процессами полимеризации, обеспечивающими образование некоторых компонентов мембраны и клеточной стенки.
Необходимо подчеркнуть, что основная структура, полученная путем полимеризации, далее обычно модифицируется; к ней даже могут присоединиться молекулы, образующиеся с помощью других биосинтетических путей. Особенно часто встречаются гликозидные антибиотики - продукты конденсации одного или нескольких сахаров с молекулой, синтезированной в пути 2.
Г. СИНТЕЗ аСЕМЕЙСһ АНТИБИОТИКОВ
Часто штаммы микроорганизмов синтезируют несколько близких в химическом и биологическом отношении антибиотиков, составляющих «семейство» (антибиотический комплекс). Образование «семейств» характерно не только для биосинтеза
Антибиотиков, а является общим свойством вторичного метаболизма, связанным с довольно большим" размером промежуточных продуктов. Биосинтез комплексов родственных соединений осуществляется в ходе следующих метаболических путей.
1. Биосинтез «ключевого» метаболита в одном из путей, описанных в предыдущем разделе.
Рифамицин У
 |
|||
окисл.
Рис. 6.1. Пример метаболического дерева: биосинтез рифамицина (объяснения см. в тексте; структурные формулы соответствующих соединений приведены на рис. 6.17 и 6.23).
2. Модификация ключевого метаболита с помощью довольно распространенных реакций, например путем окисления метальной группы в спиртовую и далее в карбоксильную, восстановления двойных связей, дегидрирования, метилирования, этерификации и т. д.
3. Один и тот же метаболит может быть субстратом двух или нескольких таких реакций, приводящих к образованию двух или большего числа различных продуктов, которые в свою очередь могут подвергаться различным превращениям с участием ферментов, давая начало «метаболическому дереву».
4. Один и тот же метаболит может образовываться в двух (или более) различных путях, в которых изменяется только
порядок ферментных реакций, давая начало «метаболической сети».
Довольно своеобразные концепции метаболического дерева и метаболической сети можно пояснить следующими примерами: биогенез семейства рифамицинов (дерево) и эритромицинов (сеть). Первым метаболитом при биогенезе семейства рифамицинов является проторифамицин I (рис. 6.1), который можно рассматривать как ключевой метаболит. В последовательности
реакций, порядок которых неизвестен, проторифамицин I превращается в рифамицин W и рифамицин S, завершая часть синтеза с использованием единственного пути («ствол» дерева). Рифамицин S является начальной точкой разветвления нескольких альтернативных путей: конденсация с двууглеродным фрагментом дает начало рифамицину О и рафимицинам L и В. Последний в результате окисления анза-цепи превращается в рифамицин Y. Отщепление одноуглеродного фрагмента при окислении рифамицина S ведет к образованию рифамици- на G, а в результате неизвестных реакций рифамицин S превращается в так называемый рифамициновый комплекс (рифа- мицины А, С, D и Е). Окисление метальной группы при С-30 дает начало рифамицину R.
Ключевым метаболитом семейства эритромицина является эритронолид В (Эр.В), который превращается в эритромицинА (наиболее сложный метаболит) с помощью следующих четырех реакций (рис. 6.2): 1) гликозилирование по положению 3 пу
тем конденсации с микарозой (Мик.) (реакция I); 2) превращение микарозы в кладинозу (Клад.) в результате метилирования (реакция II); 3) превращение эритронолида В в эри- тронолид А (Эр.А) в результате гидроксилирования по положению 12 (реакция III); 4) конденсация с дезозамином (Дез.) в положении 5 (реакция IV).
Поскольку порядок этих четырех реакций может варьировать, возможны различные метаболические пути, а вместе взятые они составляют метаболическую сеть, представленную на рис. 6.2. Нужно отметить, что имеются также пути, которые представляют собой комбинацию дерева и сети.
Диауксия - появление одной или нескольких переходных (т. е. временных) фаз роста в культуре. Это происходит, когда бактерии находятся в среде, содержащей два или более альтернативных источника питания. Часто бактерии используют один источник, предпочитая его другому, пока этот первый не истощится. Тогда бактерии переключаются на другой источник питания. Однако рост заметно замедляется еще до того, как произошла смена источника питания. Примером является Е. coli - бактерия, обычно обитающая в кишечнике. В качестве источника энергии и углерода она может использовать глюкозу или лактозу. Если присутствуют оба углевода, то вначале используется глюкоза, а затем рост замедляется до тех пор, пока не образуются ферменты, сбраживающие лактозу.
Образование первичных и вторичных метаболитов
Первичные метаболиты
- это продукты метаболизма, необходимые для роста и выживания.
Вторичные метаболиты
- продукты метаболизма, которые не требуются для роста и не существенны для выживания. Тем не менее они выполняют полезные функции и часто защищают от действия других конкурирующих микроорганизмов либо подавляют их рост. Некоторые из них токсичны для животных, поэтому они могут использоваться в качестве химического оружия. В наиболее активные периоды роста чаще всего они не образуются, но начинают производиться при замедлении роста, когда становятся доступными резервные материалы. Вторичными метаболитами являются некоторые важные антибиотики.
Измерение роста бактерий и грибов в культуре
В предыдущем разделе мы проанализировали типичную кривую роста бактерий . Можно ожидать, что такая же кривая характеризует рост дрожжей (одноклеточных грибов) или рост любой культуры микроорганизмов.
При анализе роста бактерий или дрожжей мы можем либо непосредственно подсчитывать число клеток, либо измерять некоторые параметры, зависимые от числа клеток, например мутность раствора или выделение газа. Обычно небольшое количество микроорганизмов засевают в стерильную питательную среду и выращивают культуру в инкубаторе при оптимальной температуре роста. Остальные условия должны быть как можно более близкими к оптимальным (разд. 12.1). Рост следует измерять от момента инокуляции.
Обычно в научных исследованиях придерживаются хорошего правила - проводить эксперимент в нескольких повторах и ставить контрольные пробы, где это можно и нужно. Некоторые методики измерения роста требуют определенного навыка и даже в руках специалистов они не очень точны. Поэтому имеет смысл ставить, если возможно, две пробы (один повтор) в каждом эксперименте. Контрольная проба, в которой к питательной среде не добавляли микроорганизмы, покажет, действительно ли вы работаете стерильно. Имея достаточный опыт, можно в совершенстве овладеть всеми описанными методами, поэтому мы советуем сначала попрактиковаться в них, прежде чем они будут использованы в работе над проектом. Определить число клеток можно двумя способами, а именно, подсчитывая либо число жизнеспособных клеток, либо общее число клеток. Число жизнеспособных клеток - это число только живых клеток. Общее число клеток - это суммарное число как живых, так и мертвых клеток; обычно этот показатель определить легче.